
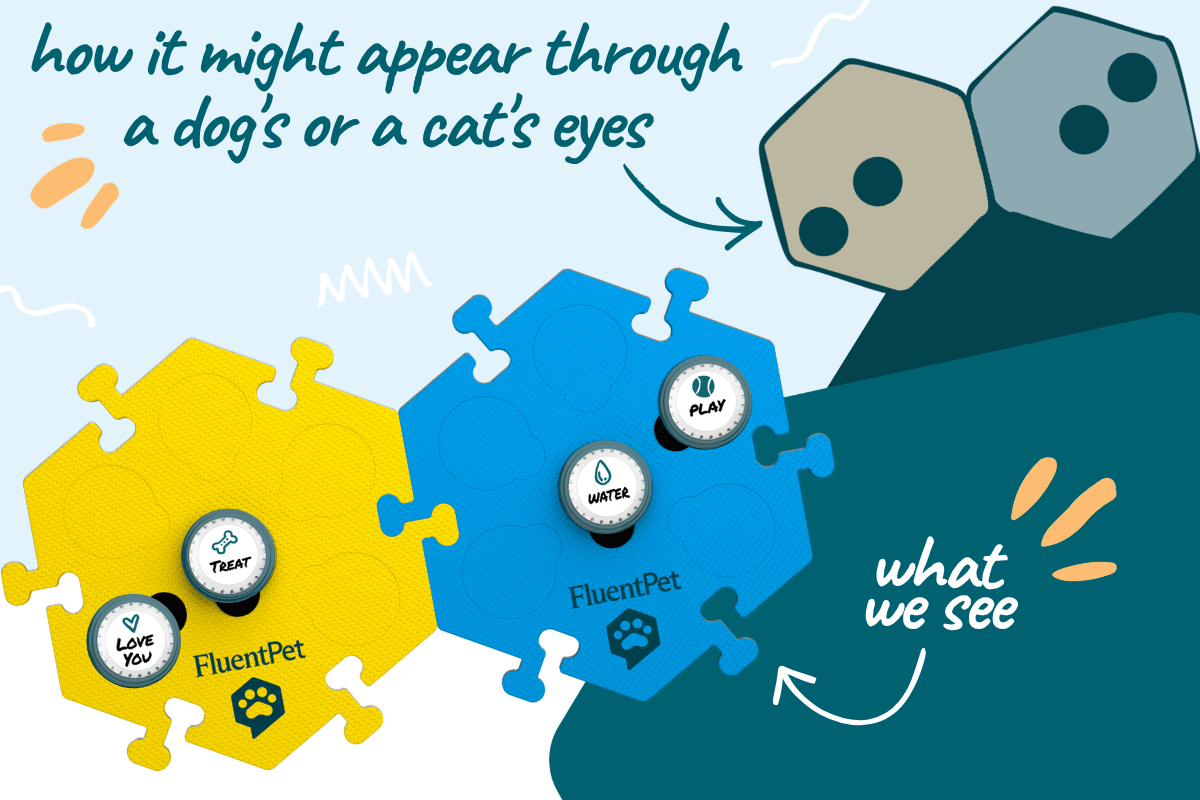
La science de la perception qui explique comment votre apprenant voit son tableau
Avant que votre apprenant puisse apprendre ce que signifie un bouton, son cerveau doit résoudre un problème plus élémentaire — si fondamental que nous y pensons rarement. Il doit regarder une surface plane couverte d’objets circulaires et la percevoir comme un ensemble d’éléments distincts sur lesquels il peut appuyer.
Chacun se détachant des autres et de la surface en dessous.
Cela semble anodin. Il n’en est rien. Les données visuelles brutes qui entrent dans les yeux de votre apprenant ne sont qu’un mélange de lumière, d’ombre, de couleurs et de contours. Pour en tirer « ceci est un bouton, et cela est un autre bouton », il faut un traitement neuronal sophistiqué que les scientifiques étudient depuis plus d’un siècle — et les principes qu’ils ont découverts expliquent en grande partie pourquoi certaines conceptions de tableaux de boutons fonctionnent et d’autres non.
Figure et fond : la première tâche du cerveau
Chaque scène visuelle est divisée, instantanément et automatiquement, en deux catégories : la figure (l’objet sur lequel porte l’attention, perçu comme ayant une forme définie et apparaissant « devant ») et le fond (l’arrière-plan, perçu comme informe et s’étendant derrière). Cela se produit avant toute pensée consciente. Ce n’est pas une décision. C’est un réflexe.
Le psychologue danois Edgar Rubin a formalisé ce principe dans sa thèse de doctorat de 1915.
Il s’appuyait sur ce qui allait devenir l’une des images les plus célèbres de la psychologie : le vase de Rubin. On y voit soit un vase blanc, soit deux profils sombres — jamais les deux à la fois. L’image n’a pas changé. C’est l’attribution figure-fond de votre cerveau qui a changé.
Qu’est-ce qui détermine quel élément devient la « figure » ? Les recherches en psychologie de la perception ont mis en évidence plusieurs facteurs : les régions plus petites tendent à être vues comme figure. Les régions fermées l’emportent sur celles qui les entourent. Les éléments plus contrastés ressortent. Les formes convexes dominent les formes concaves. Et surtout, les éléments situés dans la partie inférieure du champ visuel sont plus susceptibles d’être perçus comme figure — ce qui compte lorsque votre apprenant regarde un tableau de boutons posé au sol.
Chaque bouton d’un tableau doit être perçu comme « figure » sur le « fond » de la dalle. C’est le cas de la manière la plus fiable lorsque les boutons sont physiquement surélevés par rapport à la surface de la dalle, lorsqu’ils diffèrent de la dalle par leur couleur ou leur texture, et lorsque des ombres ou des indices de profondeur renforcent la séparation. Un autocollant plat sur une surface plane ? Le cerveau risque de ne pas l’analyser du tout comme un objet distinct. Un bouton bombé et surélevé, logé dans une dalle à cavité ? La séparation figure-fond est immédiate et se fait sans effort.
Les lois du regroupement : comment les boutons s’organisent
Une fois les boutons perçus individuellement, la tâche suivante du cerveau consiste à les organiser.
C’est là qu’interviennent les psychologues de la Gestalt — un groupe de chercheurs allemands dont les travaux, à partir du début du XXe siècle, ont montré que la perception n’est pas une simple collection de parties. Le cerveau organise spontanément les éléments en ensembles structurés.
L’article fondateur de Max Wertheimer, publié en 1923, décrivait plusieurs lois du regroupement perceptif, qui s’appliquent toutes à un tableau de boutons :
Proximité : les éléments proches les uns des autres sont perçus comme allant ensemble. Les boutons placés sur un même HexTile sont automatiquement regroupés dans la perception de l’apprenant, tandis que ceux de dalles différentes forment des groupes distincts — même si la distance physique est faible. C’est pourquoi placer les mots apparentés (mots liés à la nourriture, mots liés aux activités) sur la même dalle aide les apprenants à construire des catégories spatiales.
Similarité : les éléments qui partagent des caractéristiques visuelles — couleur, forme, taille — sont regroupés. Si tous les boutons liés à la nourriture sont d’une couleur et tous les boutons d’activité d’une autre, le cerveau de l’apprenant les regroupe avant tout apprentissage. Le système perceptif fait le travail d’organisation à votre place.
Continuité : les éléments disposés le long d’une ligne ou d’une courbe sont perçus comme liés. Une rangée de boutons donne l’impression d’une séquence. Un amas donne l’impression d’un groupe.
Région commune : les éléments compris dans une même limite sont regroupés. Chaque HexTile fait office de limite et crée des « contenants » perceptifs pour les boutons qu’il accueille.
Ces principes ont été confirmés chez plusieurs espèces, dont les pigeons, les poissons et les primates. Si les recherches directes sur la Gestalt chez les chiens et les chats restent limitées, les mécanismes neuronaux qui sous-tendent l’organisation perceptive sont très conservés chez les mammifères. Le cerveau de votre apprenant regroupe les boutons avant même de comprendre à quoi sert chacun d’eux.
Différences juste perceptibles : quel contraste suffit ?
C’est ici que la science devient très concrète.
En 1834, le physiologiste allemand Ernst Heinrich Weber a publié De Tactu, où il décrit des expériences dans lesquelles des sujets aux yeux bandés comparaient des poids. Il a fait une découverte fondamentale : la plus petite différence qu’une personne peut détecter entre deux stimuli — la différence juste perceptible, ou DJP — n’est pas une quantité fixe. C’est une proportion du stimulus initial.
Si vous tenez un poids de 100 grammes, vous pouvez remarquer l’ajout d’environ 2 grammes. Mais si vous tenez un poids de 1 000 grammes, il faut une variation d’environ 20 grammes pour remarquer une différence. Le rapport reste constant même lorsque les quantités absolues changent. Gustav Fechner l’a formalisé mathématiquement en 1860 sous le nom de loi de Weber : ΔI/I = k.
Pour la conception des boutons, la loi de Weber signifie que le contraste entre les boutons doit dépasser le seuil de DJP de l’apprenant pour qu’ils soient perçus comme distincts. Deux boutons de nuances légèrement différentes d’une même couleur peuvent rester sous ce seuil — le cerveau est littéralement incapable de les distinguer. Deux boutons de familles de couleurs nettement différentes (bleu et jaune, par exemple) sont bien au-dessus du seuil et se distinguent sans effort.
C’est là que la biologie de la vision animale entre directement en jeu. Les chiens ont une vision des couleurs dichromatique — deux types de cônes photorécepteurs, contre trois chez nous —, ce qui signifie qu’ils voient le monde principalement en bleus et en jaunes. Les rouges et les verts se confondent en un gris brunâtre. Les chats ont une palette dichromatique similaire. Un bouton rouge et un bouton vert qui vous paraissent complètement différents peuvent être presque identiques pour votre apprenant. Mais un bouton bleu et un bouton jaune ? Ce contraste est saisissant pour les chiens comme pour les chats.
Fait intéressant, une étude de 2013 menée par Kasparson, Badridze et Maximov a montré que les chiens préfèrent en réalité se fier à la couleur plutôt qu’à la luminosité pour distinguer des stimuli — ce qui remet en cause l’idée que la couleur compte peu pour les animaux dichromates. Leur palette de couleurs limitée a pour eux une vraie signification.
Et l’acuité ?
La couleur n’est pas le seul facteur visuel. La résolution spatiale de votre apprenant compte aussi.
Les chiens ont une acuité visuelle d’environ 20/75 : ils voient à 20 pieds ce qu’un humain à la vue normale voit à 75 pieds. Les chats se situent dans une fourchette similaire, d’environ 20/100 à 20/200. Aucune des deux espèces ne peut lire le texte des étiquettes des boutons (de toute façon, elles ne savent pas lire). Mais elles perçoivent la forme, l’emplacement et le contraste de couleur aux distances en jeu lors de l’utilisation d’un tableau de boutons (généralement de 1 à 6 pieds).
Là où les chiens et les chats excellent, c’est dans la détection du mouvement. Les deux espèces ont une fréquence critique de fusion plus élevée que celle des humains, ce qui les rend plus sensibles aux mouvements et aux changements rapides. Les chiens ont aussi un champ visuel plus large (environ 240° contre 180° pour nous), mais un chevauchement binoculaire moindre.
Ainsi, les boutons qui offrent un retour par le mouvement — en s’allumant lorsqu’on appuie dessus ou en bougeant physiquement sous la patte — peuvent être plus saillants pour votre apprenant que des indicateurs statiques. Et comme les deux espèces voient bien en faible lumière (les chats ont une vision nocturne six à huit fois meilleure que celle des humains), les tableaux de boutons restent utilisables à l’aube et au crépuscule, quand de nombreux apprenants sont les plus actifs.
Pour résumer
Le système perceptif de votre apprenant accomplit un travail remarquable chaque fois qu’il s’approche du tableau de boutons. Le traitement figure-fond sépare chaque bouton des dalles. Le regroupement gestaltiste organise les boutons en ensembles spatiaux. La loi de Weber détermine si les différences de couleur et de contraste dépassent le seuil. Et les caractéristiques propres à la vision des chiens et des chats — vision dichromatique des couleurs, acuité modérée, excellente détection du mouvement — déterminent ce qui ressort et ce qui reste invisible.
Rien de tout cela n’est de l’« apprentissage » au sens où nous l’entendons habituellement. C’est l’infrastructure perceptive qui rend l’apprentissage possible. Réussissez la perception — boutons distincts, contrastes de couleur pertinents, disposition spatiale organisée — et vous ouvrez la voie à tout ce qui suit.
Références
Rubin, E. (1915). Synsoplevede Figurer. Présentation
Wertheimer, M. (1923). Laws of organization in perceptual forms. Présentation
Weber, E.H. (1834). De Tactu. Explication
Fechner, G. (1860). Elemente der Psychophysik. Présentation
Kasparson, A.A., Badridze, J., & Maximov, V.V. (2013). Colour cues proved to be more informative for dogs than brightness. Proceedings of the Royal Society B. PMC
Neitz, J., Geist, T., & Jacobs, G.H. (1989). Color vision in the dog. Visual Neuroscience. Voir aussi : PMC5717654
Miller, P.E. & Murphy, C.J. (1995). Vision in dogs. JAVMA. -e

Laisser un commentaire
Ce site est protégé par hCaptcha, et la Politique de confidentialité et les Conditions de service de hCaptcha s’appliquent.